Rottumítill finnst um heim allan, einkum þar sem loftslag er temprað og í hitabeltislöndum. Hann lifir ekki af á heimskautasvæðunum.
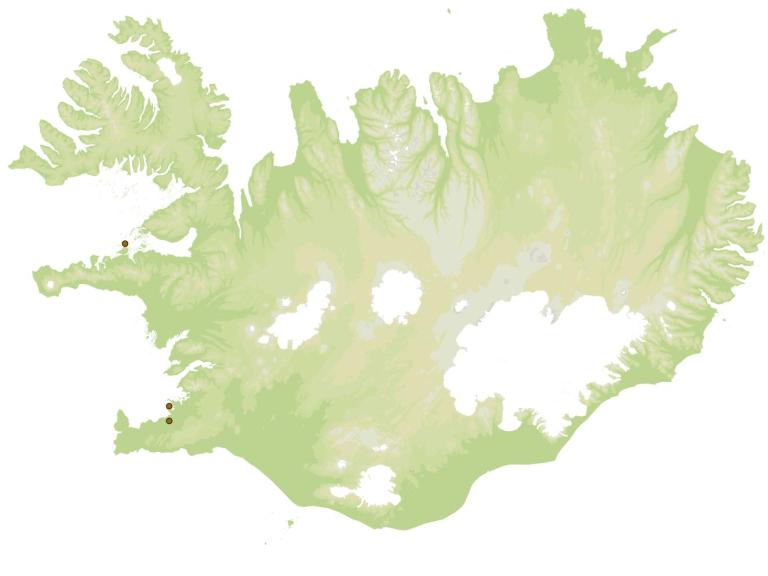
Ísland: Lítt kannað, en eintök eru til frá Reykjavík, Hafnarfirði og Stykkishólmi.
Lífshættir
Rottumítill er þekkt blóðsuga á fjölmörgum tegundum spendýra. Honum farnast best á litlum nagdýrum og er iðulega kenndur við rottur vegna þess að hann fylgir stundum rottugangi í húsum. Þar sem rottur hafa hreiðrað um sig getur mítillinn lagst á aðra íbúa, jafnt gæludýr sem manninn sjálfan.
Rottumítill þroskast í gegnum fimm stig, frá eggi í sexfætta lirfu og síðan tvö áttfætt gyðlustig áður en fullorðinsstigi er náð. Hann sýgur blóð á fyrra gyðlustigi og sem fullorðinn. Forstig gyðlunnar fellur af hýslinum eftir blóðtöku og getur seinna stigið virkað sem dvalaform. Fullorðinn mítill yfirgefur einnig hýsilinn eftir að hafa náð blóði til að verpa allt að 100 eggjum sem klekjast á hálfum til einum degi. Lirfurnar fara strax á hýsil og þróast þar upp í síðara gyðlustigið á einum til tveim dögum. Þroskatíminn er því afar hraður. Frá eggi til eggja næstu kynslóðar líða um það bil tvær vikur. Þá getur mítill fjölgað sér án æxlunar kynjanna og verður fjölgun því alla jafna afar hröð.
Almennt
Rottumítill uppgötvaðist fyrst í Ástralíu árið 1913, tíu árum seinna í Norður-Ameríku og í Evrópu árið 1931. Ekki er vitað hvenær hans varð fyrst vart hér á landi. Þó rottumítill geti fylgt músum er óvíst að hann lifi með þeim úti í náttúrunni hér á landi. Sennilega er lífsskilyrði hans einungis að finna í húsum okkar og er hann því líklegri til að fylgja húsamúsum en hagamúsum. Þetta er reyndar ókannað. Rannsókn sem fór fram á útvortis sníkjudýrum á hagamúsum á tveim stöðum hér á landi skilaði ekki rottumítlum.
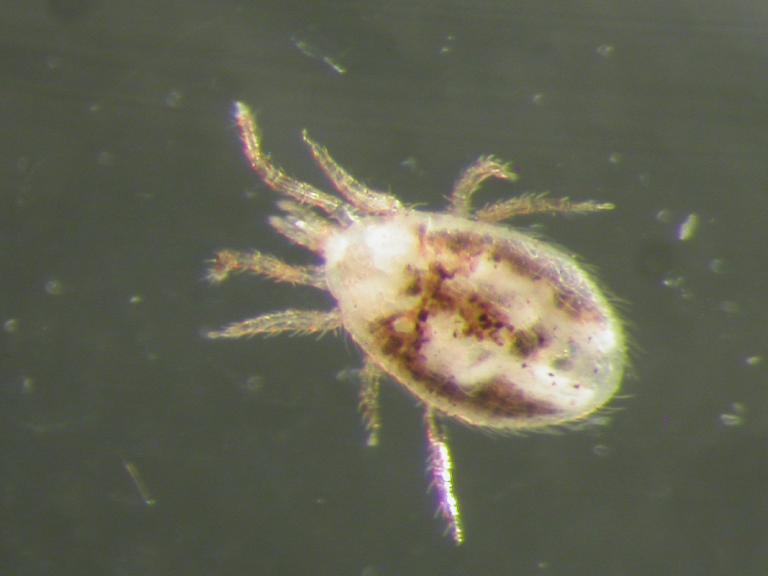
Rottumítill (<1 mm) er agnarsmár, oftast undir 1 mm. Hann er dæmigerður ránmítill að gerð, með egglaga óskiptan bol og munnlimi mótaða til að stinga í húð og sjúga upp blóð. Blóðlaus er hann afar kvikur, gráleitur á lit en verður dökkrauður eftir að hafa fyllt sig blóði og hægir þá á sér. Ef hann verður viðskila við hýsil sinn án þess að hafa náð blóði getur hann borist víða um og hratt þó agnarsmár sé í leit að hýsli. Getur farið um hús vítt og breitt, upp veggi og húsgögn og ber hratt yfir.
Bit rottumítils eru manninum að öllu jöfnu meinalítil, en þau geta þó valdið kláða, húðbólgum og útbrotum í húð, mismunandi heiftarlegum. Stundum eru ummerkin það mild að bitanna verður lítt vart. Þó hefur verið sýnt fram á það í tilraunastofum að rottumítill geti borið í sér hina mismunandi alvarlega sýkla en ekki hefur verið staðfest að hann smiti menn af þeim við náttúrulegar kringumstæður. Mítlarnir geta bitið víða á líkamanum en til að staðfesta meinsemdin sé rottumítill sé þarf helst að finna hann og greina. Leggja má út límspjöld á viðeigandi staði og skoða þau gaumgæfilega að einhverjum tíma liðnum. Nær vonlaust er að leita mítlanna á annan hátt svo smáir sem þeir eru. Oftast jafnar fólk sig fljótt af bitunum og því ekki nauðsynlegt að grípa til lækninga. Ef vitað er um rottu- eða músagang í húsum er sannarlega rétt að vera á varðbergi. Nauðsynlegt er taka slík híbýli til gagngerar skoðunar, uppræta nagdýrin og vera á varðbergi gagnvart gæludýrum heimilanna sem geta viðhaldið mítlunum. Rottumítill getur lifað í allt að tvo mánuði án þess að fá blóð.
Útbreiðslukort
Rottumítill (Ornithonyssus bacoti) - fundarstaðir samkvæmt eintökum í safni Náttúrufræðistofnunar Íslands
Bengtson, S.-A., G. Brinck-Lindroth, A. Lundquist, A. Nilsson & S. Rundgren 1986. Ectoparasites on small mammals in Iceland: origin and population characteristics of a species-poor insular community. Holarctic Ecology 9: 143–148.
Sigurður H. Richter 1977. Bit á mönnum af völdum staraflóar, rottuflóar og rottumaurs. Læknablaðið 63: 107–110.
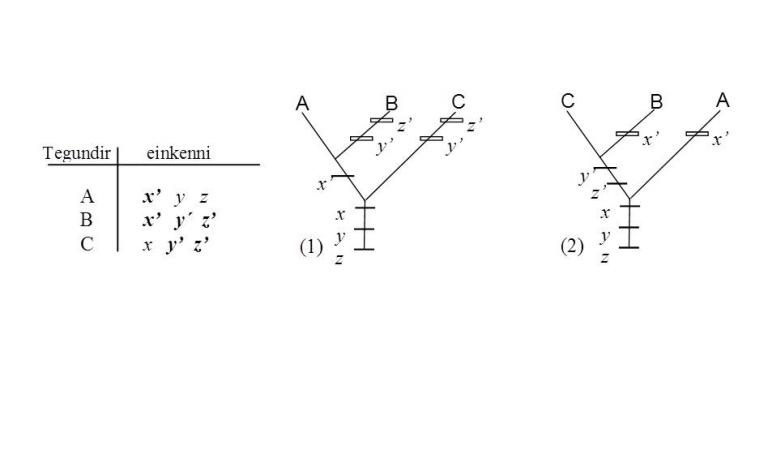
Möguleg þróunartré fyrir tegundir A, B og C. Tegundir A og B hafa hópkennið x´ (synapomorphy) sem er umbreytt frumkennið x (symplesiomorphy). Á sama hátt hafa B og C hópkennin y’ og z’. Þróunartré (1) gerir ráð fyrir að x’ hafi myndast í einu skrefi og erfst meðal tegunda A og B: ef svo er þá verður að gera ráð fyrir að hópkennin y’ og z’ séu sýndarlíkingar (homoplasies) og að samanlagt hafi þau myndast í fjórum sjálfstæðum þróunarskrefum í tegund B og C. Heildarfjöldi skrefa fyrir tré (1) eru því 5. Með líkum hætti þá útheimtir þróunartré (2) aðeins 4 skref og lágmarkar því fjölda hugsanlegra sýndarlíkinga. Tré (2) er því jafnframt líklegasta þróunartréð á grundvelli fyrirliggjandi gagna. – Ljósm. Guðmundur Guðmundsson
Almennt
Elsta steingerða lífveran á jörðinni er um 3,6 milljarða ára og fyrir um 600 milljónum ára voru allar helstu megindeildir lífheimsins komnar fram, svonefnd ríki (Kingdoms): dreifkjörnungar (Procaryota), einfrumungar (Protista), sveppir (Fungi), plöntur (Plantae) og dýr (Animalia), einnig nefnd vefdýr.
Síðustu áratugina hefur skilningi á þróunarsögu lífs fleygt fram, einkum vegna rannsókna á erfðamengi tegunda og bættra tölfræðiaðferða við að leiða líkum að innbyrðis skyldleika þeirra. Líklegasta þróunarsagan er táknuð með skyldleikatré (cladogram), sem er prófanlegt líkan eða nálgun að margbrotinni atburðarás. Flokkunarkerfin endurspegla hinsvegar aðeins helstu og best þekktu tegundahópana, en þó þannig að hver tegundahópur endurspeglar sameiginlegan uppruna útfrá einni sameiginlegri móðurtegund. Rótin á flokkunartrénu samsvarar lífríkinu og uppruna alls lífs, sem greinist í sífellt smærri ættmeiða, allt til tegunda.
Tegundir eru samsafn áþekkra lífvera sem eru gerðar úr einni eða fleiri frumum. Allar lífverur afla sér næringar til viðurværis, þær geta að nokkru leyti brugðist við og lagað sig að breyttum aðstæðum og eignast smávægilega arfbreytt afkvæmi í eigin mynd. Náttúruval hefur valdið því að lítilsháttar arfgengur einstaklingsmunur hefur í tímans rás, orðið að þeirri gjá sem aðgreinir helstu fylkingar og flokka núlifandi tegunda.
Flokkunarfræðingar hafa sammælst um að auðkenna tegundahópa með svonefndu flokkunarstigi (taxonomical rank) til að staðsetja hópa innan þróunartrésins. Rót flokkunartrésins samsvarar lífheiminum, eða öllum tegundum jarðar, sem síðan greinist í sífellt smærri flokkunarheildir: lén (domain), ríki (kingdom), fylkingar (phylum), flokka (class), ættbálka (order), ættir (family), ættkvíslir (genus) og tegundir (species). Algengt er að flokkunarstigin séu mun fleiri ef kvíslgreining þróunar er vel þekkt, einkum innan tegundaríkra flokkunarheilda. Flokkunarstigin eru eingöngu hugsuð sem afstæð röðun tegundahópa eftir sama ættmeið innan þróunartrésins, en að öðru leyti eru flokkunarstigin gagnólík. Þannig er til dæmis engin náttúruleg samsvörun milli ranabjölluættarinnar (Curculionidae) með 50.000 tegundir og mannættarinnar (Hominidae), með sex tegundir, ásamt Homo sapiens.
Flokkunarfræði
Viðfangsefni flokkunarfræðinnar er að leiða líkum að þróunarsögu tegunda og flokka eftir uppruna. Yfirleitt gerður greinarmunur á skyldleikafræði (systematics), flokkunarfræði (taxonomy) og nafngiftafræði (nomenclature). Almennt er litið svo á að viðfangsefni skyldleikafræðinnar séu að skýra fjölbreytni lífs í ljósi þróunar. Flokkunarfræðin fæst við afla gagna um tegundir, lýsa þeim og skipa í flokkunarkerfi (classification) í samræmi við líklegasta þróunartréð. Enginn skarpur greinarmunur er á skyldleikafræði og flokkunarfræði og algengt að þessi heiti séu notuð jöfnum höndum, nánast í sömu merkingu. Hinsvegar hefur nafngiftafræðin skýrt tæknilegt markmið um að þróa og innleiða staðlað alþjóðlegt regluverk um nafngiftir tegunda og flokkunarheilda, eftir stigskiptu kerfi (hierachical system). Reynslan sýnir að hirðuleysi í flokkunarfræðilegum nafngiftum veldur allskyns misskilningi og þvælist fyrir eðlilegri þekkingaröflun. Með nafngiftareglunum er þó alls engin afstaða tekin til fræðilegra kenninga í skyldleika- eða flokkunarfræði.
Flokkunarkerfi eru stundum aðlöguð í ýmsum tilgangi, til dæmis þegar tegundir eru flokkaðar eftir búsvæðum, vistfræðilegu mikilvægi, fæðuvali eða flokkunin jafngildir greiningarlykli. Slík hentiflokkun (nominalism; arbitrary classification) hefur það meginmarkmið að þjóna þörfum notenda á sem skilvirkastan hátt. Slík flokkun byggist á fyrirfram völdum upplýsingum samkvæmt áhugasviði eða þörfum notenda og getur stangast óþyrmilega á við aragrúa arfgengra sérkenna sem afmarka náttúrulega tegundahópa sem eiga sér sameiginlegan uppruna.
Markmið svonefndrar upprunaflokkunar (phylogenetic systematics) er að leiða líkum að kvíslgreiningu þróunar, sem er táknað með skyldleikatré (cladogram). Kvíslgreining þróunartrésin, eða ættmeiðamyndunin, er reiknuð útfrá gagnasafni um sameiginleg sérkenni fjölda tegunda og er nálgun eða líkan af raunsönnum þróunarvenslum.
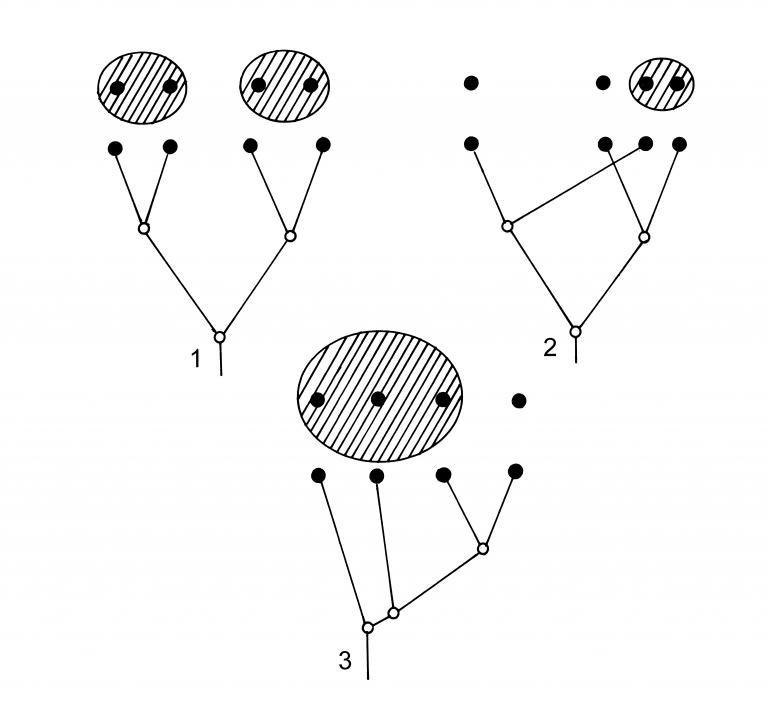
Hver flokkunarheild getur verið ein eða fleiri tegundir og er það táknað sem sjálfstæð grein á skyldleikatrénu. Náttúrulegir tegundahópar innihalda alla afkomendur frá einni og sömu móðurtegundinni. Slíkir hópar eru sagðir einættaðir (monophyletic). Vanættaðir hópar (paraphyletic) eru flokkunarheildir sem innihalda aðeins suma en ekki alla afkomendur sameiginlegs áa. Fjölættaðir hópar (polyphyletic) innihalda tvær eða fleiri fjarskyldar móðurtegundir og eftir atvikum aðeins suma af afkomendum þeirra. Bæði van- og fjölættuðum tegundahópum er hafnað sem tilviljanakenndri hentiflokkun.
Upprunaflokkun
Skordýrafræðingurinn Willi Hennig (1913-1976) er einn af frumkvöðlum upprunaflokkunar (phylogenetic systematics), en hún byggist á nokkrum einföldum grunnatriðum. Hennig færði rök fyrir því að einu nothæfu vísbendingarnar um þróunarskyldleika tegunda væru hverskyns afleidd sérkenni sem hafa erfst í breyttri mynd meðal allra afkomenda frá einum sameiginlegum forföður. Slík sérkenni nefndi hann hópkenni (synapomorphy). Tilurð slíkra afleiddra sérkenna má yfirleitt skýra sem ummyndun á frumstæðum eiginleika, sem hann nefndi frumkenni (symplesiomorphy). Frumkennið vísar því til eiginleika tegunda innan mun víðtækari flokkunarheildar en þeirrar sem er til athugunar hverju sinni. Hugtökin hópkenni og frumkenni eru því afstæð í þeim skilningi að þau vísa til upprunaskyldra eiginleika meðal flokkunarheilda sem samsvara kvíslgreiningum á þróunartrénu: þannig sitja hópkenni ofar í þróunartrénu en samsvarandi frumkenni eru neðar. Dæmi um hópkenni gæti til að mynda verið fjórir ganglimir af þeirri gerð sem einkennir hópinn ferfætlinga (Tetrapoda). Margt bendir til að slíkir ganglimir séu ummyndaðir uggar á fiskum, sem væru þá frumkenni ganglima, en það einkennir víðtækar flokkunarheild á þróunartrénu sem er neðan við hópinn ferfætlinga. Á sama hátt eru vængir leðurblaka ummyndaðir ganglimir og eru því vísbending um sameiginlegan uppruna allra leðurblaka – í þessu tilviki er frumkennið „ganglimir ferfætlinga“ og þar fyrir ofan á trénu er hópkennið „leðurblökuvængir“. Þannig er haldið áfram að leita sífellt fleiri hópkenna og afhjúpa tré sem endurspeglar kvíslgreiningu þróunar.
Nú er það svo í reynd að allar gagnaskrár um ætluð hópkenni tegunda (putative synapomorphies) innihalda einhverjar mótsagnir um sameiginlegan uppruna þeirra. Dæmi um það er gagnaskráin á meðfylgjandi mynd. Tegundir A og B, hafa hópkennið x’ en ekki tegund C sem hefur frumkennið x. Það bendir til að tegundir A+B hafi báðar erft x’ í umbreyttri mynd frá sameiginlegum forvera og tilheyri því einættuðum hóp sem tegund C er ekki hluti af (sjá mynd, tré 1). Hinsvegar hafa tegundir B og C hópkennin y’ og z’, sem eru aljöfn (congruent) þar sem bæði styðja tilgátuna um að B+C myndi einættaðan hóp sem tegund A er ekki hluti af (sjá mynd, tré 2). Það eru því tvöfalt fleiri hópkenni sem benda til að tegundir B+C séu innbyrðis skyldari en A+B. Ef tré (2) reynist rétt þá kallar það á aukatilgátu sem segir að hópkennið x’ sé í raun sýndarlíking (homoplasy) sem myndaðist í tveimur sjálfstæðum skrefum við þróun tegunda A og B. Sýnt hefur verið fram á að þróunartré sem lágmarkar fjölda sýndarlíkinga, eins og tré (2), er jafnframt það líklegasta á grundvelli tiltekins gagnasafns.
Gögn yfir hópkenni tegunda, eins og kirnaraðir gena, eða líkamsgerð, geta verið gríðarlega umfangsmikil. Þróaðar hafa verið tölfræðiaðferðir til að finna líklegasta þróunartréð fyrir gagnasöfn af ýmsum toga. Í grófum dráttum má skipta þessum aðferðum í tvennt. Annarsvegar eru þær sem byggjast á einföldunargildi (parsimony criterion) og hinsvegar þær sem styðjast við þróunarlíkön, sem aftur eru tvenns konar; í fyrsta lagi aðferð mesta sennileika (maximum likelihood) og hinsvegar aðferðir sem byggjast á bayesískum líkindareikningi. Reyndar eru nafngiftir á þessum aðferðum nokkuð villandi, vegna þess að einföldunaraðferðin (parsimony) tilheyrir einnig flokki tölfræðiaðferða sem eru kenndar við mesta sennileika.
Samrunaþróun og takmörk upprunaflokkunar
Síðustu áratugina hafa þróunartré að verulegu leyti byggst á gögnum um byggingu prótína og gena. Slíkar upplýsingar hafa til að mynda umbylt flokkun blómplantna og dregið fram áður hulinn skyldleika meðal dýra, en jafnframt rennt styrkari stoðum undir viðteknar hugmyndir um skyldleika stærri flokkunarheilda. Þróunartré sem grundvallast á einu eða fleiri genum eru gjarnan kölluð genatré (gene tree). Í ljós hefur komið að mismunandi gen veita misvísandi upplýsingar um skyldleika tegunda svipað og þekkt er með hefðbundin líkamseinkenni eins og beinabyggingu, vöðva, blóðrásarkerfi og fleira. En genin hafa einnig varpað ljósi á furðulegt og áður óþekkt fyrirbrigði, sérstaklega í þróun örvera.
Hefðbundin flokkunarkerfi byggjast á því að hver flokkunarheild og tegund geti aðeins verið upprunnin af einum móðurstofni. Almennt hefur ekki verið gert ráð fyrir að ættmeiðar sem hafa eitt sinn aðgreinst, gætu runnið saman síðar í þróunarsögunni. Hver tegund er því mögulega upphafið að nýjum ættmeið, algerlega einangrað og óháð fjarskyldari flokkunarheildum. Þannig virtist sem þróuninni væru sett ákveðin mörk. Það heyrði til undantekninga að nýjar tegundir yrðu til á einni kynslóð við kynblöndun fjarskyldra tegunda, þótt slík samrunaþróun (reticulate evolution) hafi löngum verið kunnuglegt úrlausnarefni við flokkun ýmissa plantna. Flokkun slíkra blendingstegunda skapar töluverð vandkvæði í hefðbundnum flokkunarkerfum sem eru hugsuð til að endurspegla kvíslgreind þróunartré. Talið var að örverur fylgdu sama kvíslgreinda þróunarferli og dýr og plöntur. Genarannsóknir hafa leitt í ljós að uppruni frumulíffæra á borð við hvatbera og grænukorn verður best útskýrður með samrunaþróun, þar sem örverur af mismunandi tegundum runnu saman í fyrndinni og urðu hlutar af nýjum tegundum. Samhliða því fluttust gen úr erfðamengjum grænukorna og hvatbera inn í erfðamengi viðkomandi „hýsiltegunda“. Þróunarsaga grænukorna og hvatbera á sér því sjálfstæða þróunarsögu áður en þau urðu hlutar af nýjum tegundum og ættbogum.
Síðustu áratugina hefur komið sífellt betur í ljós að bakteríutegundir geta skipst á genum. Þess háttar genaflakk eða láréttur genaflutningur (lateral / horizontal gene transfer) hefur að nokkru marki átt sér stað milli fjarskyldra flokkunarheilda og virðist hafa skipt umtalsverðu máli í þróun örvera. Þegar gen flyst úr einni tegund og yfir í aðra fjarskylda tegund, þá flytjast með aðskotageninu þær stökkbreytingar sem urðu innan upprunalegs ættmeiðs. Að þessu leyti hafa þróunarsögur tveggja ættmeiða runnið saman. Til að greina samrunaþróun af þessum toga meðal örvera er lesið úr mörgum genum, oft heilum erfðamengjum. En samrunaþróun varpar nýju ljósi á merkingu hugtaksins tegund. Til dæmis samanstendur genamengi saurgerilsins Escherichia coli af um 4.288 genum, en uppruna 755 þeirra má skýra sem genaflakk úr fjarskyldum tegundum raunbaktería síðustu 100 ármilljónirnar. Uppruna hvatbera í heilkjörnungum má rekja til svonefndra alfa-dreifkjörnunga og sennilegast eru grænukorn plantna komin af blágrænuþörungum. Slík samrunaþróun fellur ekki vel að kvíslgreindu þróunartré, með einangruðum ættmeiðum sem mynduðust fyrst við aðskilnað tegunda. Þó er sennilegt að verulega hafi dregið úr vægi samrunaþróunar meðal fjölfruma dýra og plantna, en fjölfrumungar urðu ekki til fyrr en tiltölulega langt var liðið á þróunarsögu lífsins. Ái allra lífvera var því ef til vill ekkert eitt lífsform né heldur ákveðinn afmarkaður ættmeiður. Hugsanlega var það samfélag allskyns dreifkjörnunga sem skiptust á genum og þróuðust sem misjafnlega einangraðir hlutar innan sömu heildar. Smám saman varð genaflakk tiltölulega fátíðara milli afmarkaðra hópa þegar hver og einn aðlagaðist að mismunandi umhverfisskilyrðum og myndaði sérhæfða líkamsgerð og lífsmáta, sem samsvara núlifandi flokkunarheildum raunbaktería, fornbaktería og heilkjörnunga. En í reynd er það varla svo að þessar niðurstöður kollvarpi algerlega viðteknum hugmyndum lífsins tré, þó að vissulega breyti þær undirstöðum þess og varpi nýju ljósi á rætur þróunarsögunnar.
(gg@ni.is)
Myndir
Myndatexti: Þrjár mismunandi gerðir af flokkunarheildum. (1) Tveir einættaðir hópar (monophyletic groups) sem hvor um sig inniheldur alla afkomendur frá einum sameiginlegum áa. (2) Fjölættaður hópur (polyphyletic group) inniheldur aðeins hluta af afkomendum tveggja eða fleiri áa. (3) Vanættaður hópur (paraphyletic group) inniheldur aðeins nokkra af afkomendum eins forföður. Aðeins einættaðir hópar samsvara náttúrulegum flokkunarheildum, en fjöl- og vanættaðir hópar eru tilbúnar flokkunarheildir eftir ýmsum hentugleikum og eru á skjön við kvíslgreiningu þróunar. (Eftir Hennig 1965, 2. mynd) – Ljósm. Guðmundur Guðmundsson
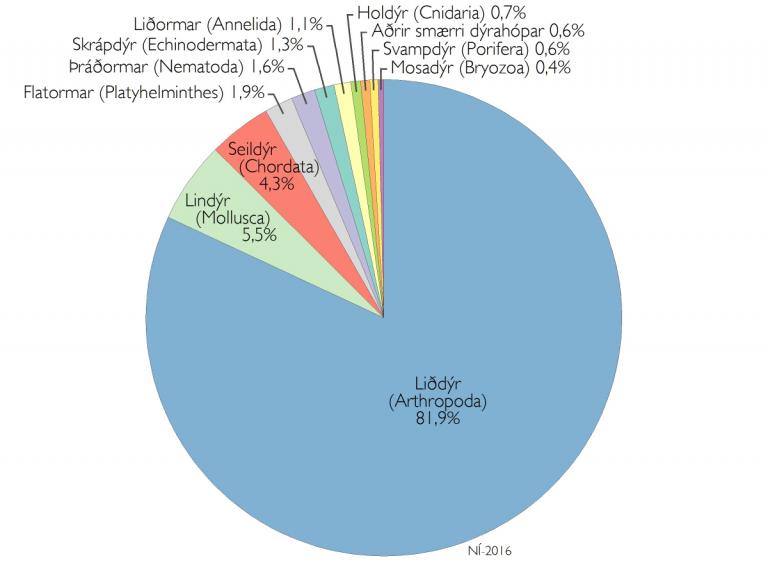
Hlutfallsleg skipting dýrategunda milli helstu hópa og fylkinga – Ljósm. Guðmundur Guðmundsson
Almennt
Dýr eru fjölfruma heilkjörnungar (Eucaryota) með ýmsa sérhæfða frumuvefi og líffæri sem aðrar lífverur hafa ekki, til að mynda taugar og vöðva. Flest bendir til að allar dýrategundir myndi einættaða flokkunarheild (monophyletic group), þ.e. að uppruni þeirra er rakinn til einnar og sömu móðurtegundarinnar. Nánasti ættingi dýra eru kragafrumungar (Choanoflagellata), en það eru einfrumungar sem mynda laustengt sambýli margra einstaklinga. Hin sameiginlega formóðir allra vefdýra og núlifnandi kragafrumunga var uppi fyrir rúmlega 600 milljón árum, eða á ofanverðu forkambríum.
Öll dýr eru ófrumbjarga og afla sér næringar með því að taka til sín lífræna fæðu með ýmsum hætti. Þótt slíkur lífsmáti einkenni dýr, þá þekkist hann einnig meðal annarra lífvera, til að mynda gerla og sumra plantna sem veiða dýr sér til viðurværis. Ófrumbjarga lífsmáti er því afar frumstæður eiginleiki, í þeim skilningi að hann varð til og þróaðist löngu fyrir tilurð dýra.
Núlifandi dýr skiptast í um 35 fylkingar (Phylum), sem flestar aðgreindust í þróunarsögunni við upphaf kambríum, fyrir 541 milljón árum. Allflestar þessara fylkinga eiga sér fulltrúa í íslenskri náttúru. Langsamlega tegundaríkasta fylkingin er liðdýr, en þar á meðal eru skordýr, krabbadýr og fleiri fjölskrúðugir undirhópar. Af öllum þekktum tegundum jarðar, þá eru um 82% liðdýr, en þar á eftir eru lindýr, með um 6% tegundanna. Áætla má að heildarfjöldi dýrategunda í heiminum séu um 7,7 milljónir, en þar af er aðeins búið að uppgötva rúmlega 1,6 milljón. Þótt aðeins lítill hluti dýrategunda sé þekktur, þá er nokkuð víst að hlutfallsleg skipting þeirra milli fylkinga liggi fyrir í megindráttum.
Íslenskar dýrategundir skipta þúsundum. Á landi og í ferskvatni eru þekktar rúmlega 2.000 tegundir og innan íslenskrar efnahagslögsögu er vitað um ríflega 2500 tegundir. Heildarfjöldinn er þó eflaust margfalt meiri, enda eru fjölmargir tegundaauðugir dýrahópar í íslenskri náttúru lítt rannsakaðir.
(gg@ni.is)
Heimildir
1.Zhang, Z-Q. (2013). Animal biodiversity: An update of classification and diversity in 2013. Zootaxa, 3703: 5-11.
2.Lecointre, G. & Le Guyader, H. 2006. The tree of life, Harvard Univ. Press, London.
3. Mora C, Tittensor DP, Adl S, Simpson AGB, Worm B (2011). How Many Species Are There on Earth and in the Ocean? PLoS Biol 9(8): e1001127.doi:10.1371/journal.pbio.1001127
Liðdýr er fylking hryggleysingja með ytri stoðgrind, liðskiptan bol og liðskipta fætur. Stoðgrindin er gerð úr kítíni, stundum að nokkrum hluta úr kalki. Stoðgrindin heftir vöxt og hafa dýrin því hamskipti á vaxtarskeiðum. Að grunni til hefur hver liður bolsins par útlima sem þróast hafa á ótal vegu. Á liðum sem mynda höfuð hafa útlimirnir myndað munnlimi, á frambol ganglimi, einnig á afturbol nema útlimir öftustu liða sem taka þátt í myndun kynfæra. Þetta byggingarform hefur boðið upp á óþrjótandi möguleika á þróunarbrautinni og leitt til þess að liðdýr er langsamlega tegundaríkasta fylking dýraríkisins og hýsir um 80% allra dýrategunda sem lýst hefur verið. Liðdýr finnast nær hvarvetna á jörðinni, frá þurrustu auðnum á landi niður í hafdjúpin. Þó stærðarmunur sé mikill þá setur líkamsgerðin stærðinni takmörk. Þar ræður ytri stoðgrind miklu svo og loft- og efnastreymi um líkamann sem fer fram í opnum líffærakerfum. Stærstu liðdýrin lifa í sjó.
Klóskerar mynda stóra undirfylkingu liðdýra með fulltrúa í sjó vötnum og á landi. Í sjó eru tveir flokkar klóskera, skeifukrabbar (Xiphosura) og sæköngulær (Pycnogonida), á landi flokkurinn áttfætlur (Arachnida) sem finnst einnig í minni mæli í fersku vatni. Klóskerar hafa að grunni til tvískiptan bol, mismunandi áberandi, og limi framan við munn sem oft mynda klóskæri eða griparma.
Áttfætlur skipa flokk smádýra innan undirfylkingar klóskera (Chelicerata). Eins og nafnið bendir til hafa áttfætlur átta fætur og eru auðþekktar á því. Þær hafa hvorki fálmara né vængi og auk þess er líkami áttfætlna annað hvort tvískiptur eða fljótt á litið óskiptur ólíkt líkama skordýra sem öll hafa þrískiptan líkama.
Flestar áttfætlur eru rándýr sem veiða önnur smádýr sér til matar. Sumar eru sníkjudýr sem leggjast á dýr og plöntur. Enn aðrar nærast á rotnandi plöntuleifum.
Fjórir ættbálkar áttfætlna finnast á Íslandi. Þeir eru köngulær (Araneae), langfætlur (Opiliones), smádrekar (Pseudoscorpiones) og mítlar (Acari). Þá má geta sporðdreka (Scorpiones) sem eru alkunnir og skipa ættbálk sem ekki finnst hér á landi.
Um fjórðungur mítlategunda tilheyrir þessum ættbálki. Ránmítlar eru af sama yfirættbálki og blóðmítlar (Ixodida), þ.e. yfirættbálkinum Anactinotrichida. Í heiminum eru þekktar yfir 8.000 tegundir sem þó er víðs fjarri raunfjölda tegunda. Í Evrópu eru um 1.500 tegundir skráðar. Þar er eflaust sömu sögu að segja
Þó ránmítlar séu af sama meiði og blóðmítlar þá eru fæstir þeirra blóðsugur. Þeir lifa upp til hópa á ránum, veiða önnur smádýr og sjúga úr þeim vessana. Fáar tegundir eru sníklar á plöntum.
Ránmítlar eru flestir á bilinu 0,2-2 mm of því margir vel sýnilegir berum augum. Þeir minnstu eru yfirleitt föllitir og með veika skel en þeir stærri hafa flestir harðan hnotubrúnan kítínskjöld yfir bolnum. Ef skjöldurinn er tvískiptur í framhluta og afturhluta þá liggja skilin þvert yfir aftan við fætur. Meðal munnlima eru fimm liða þreifarar (pedipalpi) og þriggja liða klóskæri (chelicerae) áþekk klóskærum ýmissa annarra áttfætlna, nokkurs konar griptöng sem þó er margvíslegrar gerðar eftir lífsháttum hverrar tegundar. Annars er eitt par loftopa staðsett á hliðum bolsins helsta einkenni ættbálksins.
Á Íslandi eru ránmítlar algengir í jarðvegi og gróðursverði. Þá má gjarnan sjá á hlaupum á yfirborði. Fjöldi tegunda liggur ekki fyrir.